 扫码安装网站APP(Android版)
来源公众号:生物良师
教书多年,有一个实验每次讲都觉得过瘾。
但这个实验最过瘾的地方,不是结果,而是过程。不是他们做了什么,而是他们怎么一步步想到的。
很多老师讲这个实验,一上来就说”他们用¹⁵N标记大肠杆菌,然后密度梯度离心”。好像这两个人一开始就知道该怎么做似的。
其实根本不是。
他们走了许多弯路,换了好多材料,改了标记物,甚至发明了一项新技术。整个过程花了将近四年。
今天我带你走一遍他们当年走过的路。走完你就知道,什么叫假说演绎,什么叫生物学最美的实验。
1954年夏天,美国Woods Hole海洋生物学实验室。两个年轻人在一棵树下聊天,手里端着金汤力。
一个叫梅塞尔森,24岁,加州理工一年级研究生,跟着鲍林做X射线晶体学。另一个叫斯塔尔,刚拿到博士学位,研究噬菌体。
那是沃森和克里克发表DNA双螺旋结构后的第二个夏天。双螺旋提出来了,但有个问题没人能回答:DNA复制的时候,原来那两条链去哪了?
当时有三种说法。
沃森和克里克说半保留,先解旋,然后老链当模板,各配一条新链。有人说全保留,老链俩还待在一起,新链俩另起炉灶。还有一种更邪乎,说老链会被随机切成一段一段,跟新链掺着来,叫弥散复制。
三种说法各有各的道理,谁也不服谁。因为DNA太小了,你没法盯着它看。所以,整个生物学界围绕这个问题吵翻了天。
斯塔尔当时在研究噬菌体的重组,想知道重组和复制是不是一回事。但他自己后来说,那时候他的实验想法”很蹩脚”,做出来的数据根本没法解读。
梅塞尔森呢?他在研究完全不相干的东西。但这年早些时候,他听了一场讲座,心里埋下了一颗种子。
那场讲座的主讲人是法国科学家莫诺,讲的是大肠杆菌的乳糖代谢。
莫诺提了个问题:大肠杆菌遇到乳糖后产生的那种酶,是早就存在但被激活了呢?还是完全新合成的呢?
梅塞尔森坐在台下,突然冒出一个想法。如果用氘,就是重氢,来标记氨基酸,那新合成的酶就会比旧酶重。然后用离心机一转,重的沉下面,轻的浮上面,不就分开了吗?
这个实验他没做。但这个想法他记住了:给新东西贴个”更重”的标签,然后用密度区分新旧。
跟斯塔尔在金汤力树下一聊,梅塞尔森突然意识到,这个思路可以用在DNA复制上。给旧DNA贴重标签,新DNA不贴,然后看复制完了标签怎么分。
这就是整个实验的起点。不是¹⁵N,不是大肠杆菌,不是密度梯度离心。是一个更抽象的想法:用密度做标签。
但想法有了,怎么实现?
你要区分密度差只有1%的DNA分子,普通离心不行。所有DNA都沉到底部,混成一团。
那怎么办?当时没有现成的技术。梅塞尔森和斯塔尔,加上加州理工的高级研究员维诺格拉德,一起发明了一项新技术,叫平衡密度梯度离心。
这个名字听着唬人,原理其实很简单。
你把DNA溶在高浓度的盐溶液里,用超高速离心机连甩十几个小时。盐分子被甩向管底,但扩散又把它们往回拉。最后平衡的时候,管子里从上到下形成一个密度梯度,上面轻下面重。
DNA会在梯度里上下飘,直到停在一个地方。什么地方?就是周围盐溶液的密度正好等于DNA自己密度的那个位置。
就像一个球体,在清水里沉底,在浓盐水里浮起来。但如果一杯盐水的浓度从上到下慢慢增加,它会停在某个高度不动。那个高度的盐水密度,正好等于球的密度。
但选什么盐呢?这里有个很多人不知道的弯路。
他们先在元素周期表上找,要重的、一价的、不跟DNA反应的。先试了氯化铷,分子量121。结果浓溶液的密度还是不够,浮不起DNA。
然后往下挪了一格,试了氯化铯,分子量168。成了。
就这么简单。但这一步,他们花了好几年。这项技术的论文,是梅塞尔森博士论文的一部分。他答辩的时候,费曼就在答辩委员会里。
你看,这第一个设计就不是”用了什么现成技术”,是他们为了解决这个问题,先把技术发明出来了。
技术有了,用什么生物做实验?
他们第一个选的不是大肠杆菌,是噬菌体T4。
原因很现实。斯塔尔的博士论文就是做T4的,熟。而且噬菌体基因组小,是当时知道的最小的复制系统。从简单的系统入手,天经地义。
标记物也不是¹⁵N。他们最初用的是5-溴尿嘧啶,一种胸腺嘧啶的类似物。胸腺嘧啶上的一个氢被溴原子替换了,更重。复制的时候,5-溴尿嘧啶可以代替胸腺嘧啶掺进DNA里。
听起来没问题。但做起来翻车了。
两个原因。
第一,噬菌体在细菌里面复制的时候,DNA分子之间会发生高频重组。亲代DNA的片段会和新合成的DNA连在一起。几代之后,旧DNA的分布全乱了,你根本分不清哪段是哪段。
第二,5-溴尿嘧啶是诱变剂。它会把DNA里的AT碱基对变成GC对。标记15代,突变积累一大堆,DNA都不是原来的DNA了。
这两个人甚至因为这个意外,绕道去研究了一阵子诱变机制。
所以你看,选噬菌体不是因为它”变异性大”,更准确的说法是:噬菌体的DNA重组太频繁,加上5-溴尿嘧啶的诱变作用,导致结果根本没法解读。
翻车之后怎么办?换。
他们把实验材料换成了大肠杆菌。
为什么大肠杆菌行?因为大肠杆菌的基因组DNA在复制的时候,不会像噬菌体那样发生高频重组。它就是老老实实复制,一条链当模板,合成一条新链。旧链和新链的分布是干净的。
而且大肠杆菌20分钟繁殖一代,一下午就能拿到好几代的样本。DNA提取方法当时也成熟,量够,离心后能形成看得见的条带。
标记物也换了。从5-溴尿嘧啶换成了¹⁵N。
¹⁵N是什么?就是氮元素里的胖子。比普通的¹⁴N多带一个中子,化学脾气一模一样,DNA该怎么复制还怎么复制,但体重更重。
为什么不用放射性同位素?两个原因。一是放射性会发出辐射,可能把DNA打坏。二是放射性检测只能告诉你有没有放射性,区分不了”一条链有”和”两条链都有”那点量的差别。而这个实验,恰恰需要精确到一条链。
¹⁵N就没这个问题。它不辐射,不捣乱,只是更重。而且可以直接买氯化铵形式的¹⁵N,往培养基里一加,就是唯一的氮源。细菌吃进去,就进到DNA里了。
重多少?大概1%。就这么一点点。但整个实验的突破口,就在这1%里。
到这里,三个设计都齐了:密度梯度离心技术,大肠杆菌当材料,¹⁵N当标签。没有一个是一开始就选对的,全是试出来的。
工具有了,材料备好了,标签也准备好了。开始做实验。
先把大肠杆菌放进含¹⁵N的培养基里养。养多久?至少15代。
为什么要养这么久?很多老师讲到这里就一句”先用¹⁵N培养”带过去了。其实这一步是在给实验清零。
你得保证管子里每一个DNA分子、每一条链,都是¹⁵N标记的。只要还剩一条¹⁴N的链,一开始就会冒出一条轻带,后面全乱套。
大肠杆菌20分钟一代,15代就是5个小时。5个小时后,你可以放心了,所有DNA都是重的。起点干净了。
你可能会问,为什么不反过来,先在¹⁴N里养,再转到¹⁵N里?理论上也能做,但有两个原因让先重后轻这个方向更优。
第一,¹⁵N比¹⁴N贵得多。先重后轻意味着前期用少量¹⁵N养15代,后面大量用便宜的¹⁴N。反过来的话,后续所有培养都得烧钱。
第二,更隐蔽的是DNA甲基化。大肠杆菌的老链是甲基化的,新链刚合成时还没甲基化,而甲基化会让DNA稍重一点。这就有两种情况了。
如果先¹⁵N后¹⁴N:老链是¹⁵N加甲基化,重上加重;新链是¹⁴N加未甲基化,轻上加轻。两个因素往同一个方向使劲,密度差被放大,条带分得更开。
如果先¹⁴N后¹⁵N:老链是¹⁴N加甲基化,一个拉轻一个加重;新链是¹⁵N加未甲基化,一个拉重一个减轻。两个因素互相抵消,密度差被缩小,条带容易糊在一起。
所以先重后轻不是随便选的,是让两个密度差因素叠加,把分辨力拉到最大。
这就是逻辑严密的第一步:不给自己留任何模糊地带。起点必须是100%确定的,后面的推理才站得住。
然后把细菌换到含¹⁴N的普通培养基里。从这一刻起,新合成的链全是轻的。
接下来,在不同时间点取样,提DNA,离心,看条带。
但在看结果之前,最关键的一步来了。
他们没有直接做实验然后看结果。他们先在纸上,把三种假说各自会出现什么结果,全部推演了一遍。
这就是假说演绎最核心的一步。实验还没做,判决书先写好。
我们来推一遍。
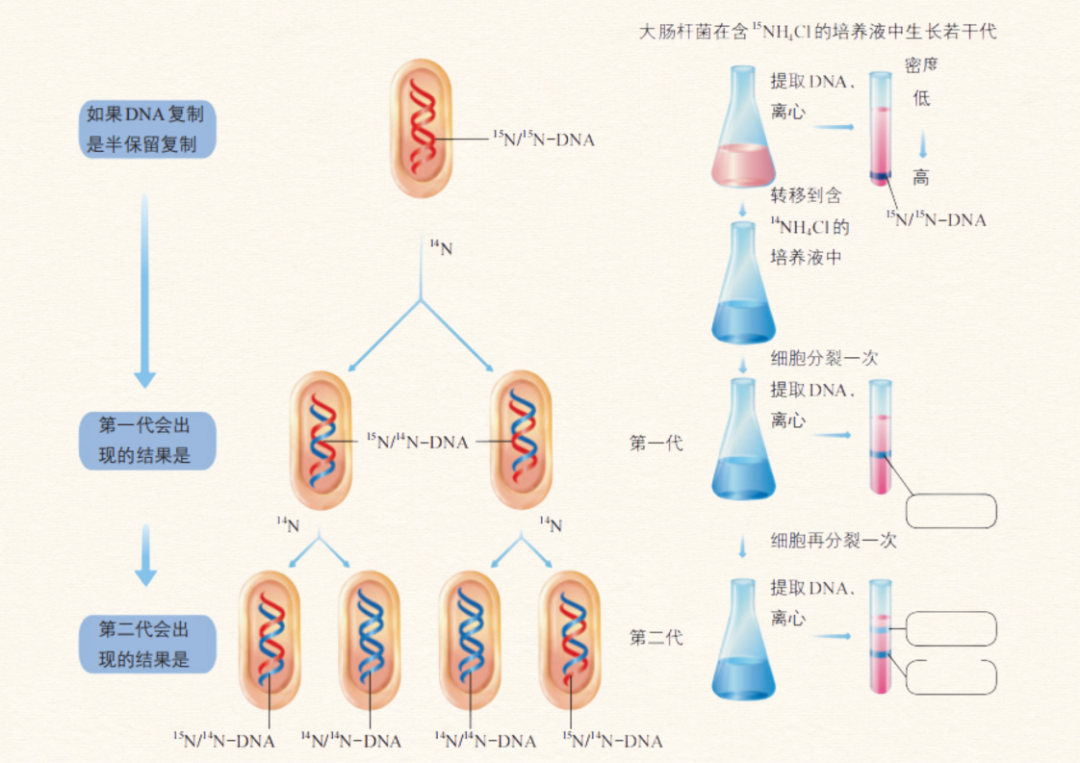
半保留的话,老链重,新链轻。子一代每个DNA都是一重一轻,密度居中,一条中带。子二代呢?中带DNA再复制,重链配出轻链,轻链也配出轻链,所以一半中带一半轻带。
全保留的话,老链俩还凑一起,是重的。新链俩另起炉灶,是轻的。子一代直接两条带,一重一轻,没有中带。
弥散的话,老链被切碎了跟新链混着拼。每个DNA里都有老片段也有新片段,整体密度居中。子一代也是一条中带。注意,这时候它跟半保留长得一模一样。
那子二代呢?弥散复制下,老片段会被越切越碎,分到更多DNA里。每个DNA里老片段的比例越来越低,整体越来越轻。所以子二代还是一条带,但位置比子一代的中带更靠上,卡在中带和轻带之间。
推完了。三种假说的预期结果摆在这里:
子一代如果出现重带加轻带,全保留对。
子一代如果只有中带,全保留错,但半保留和弥散都有可能。
子二代如果出现中带加轻带两条带,半保留对。
子二代如果出现一条介于中带和轻带之间的带,弥散对。
注意,实验还没做,谁该在什么时候出什么带,已经全部写死了。
这就是演绎的力量。不是做了实验再去解释结果,是先把结果预测好,再看现实跟哪个预测对得上。
而且这个设计最巧妙的地方在于:它不是去证明半保留是对的,而是让三个假说互相搏杀,实验结果一出来,两个自动出局,剩下的那个就是答案。
设计五:若没有对照,
“中带”就是一句空话
预测做完了。实验结果呢?
这里有个有趣的小插曲。梅塞尔森第一次做实验的时候,想同时做两种方式,一种从轻培养基换到重培养基,一种从重换到轻。斯塔尔警告他:”别这么复杂,你会搞混管子的。”
斯塔尔那天去外地面试了。梅塞尔森没听,果然搞混了管子,看到了三条带,兴奋得在暗房里大叫,把旁边一个女生吓跑了。后来才发现是把两个样本混在一起了。
斯塔尔回来后,两人老老实实做了决定性的实验。
子一代,一条带,正好在中间。全保留,出局。
子二代,两条带。一条中带,一条轻带,亮度差不多。弥散,出局。
只剩半保留。
但等等,你凭什么说子一代那条带是”中带”?管子里就一条带,万一它其实是轻带呢?万一离心没甩到位呢?
这就是第五个设计:对照。
梅塞尔森和斯塔尔设了对照。他们把纯¹⁵N的DNA和纯¹⁴N的DNA分别离心,先摸清了重带和轻带各自在管子里的精确位置。有了这两把尺子,子一代那条带正好卡在正中间,你才能说它是中带。
没有这两把尺子,你看到一条带说它是中带,那是猜。有了对照,”中带”才从感觉变成了事实。
这也是高考特别爱考的点,问你设纯¹⁵N和纯¹⁴N对照干嘛用的。答案很简单:当尺子用,确定中带的密度确实介于重带和轻带之间。
到这里,半保留已经赢了。但梅塞尔森和斯塔尔多做了一步。
他们把子一代的中带DNA拿出来,加热,让双链解开变成单链,再离心。
结果出现了两条密度不同的带,分别对应含 ¹⁵N 的单链和含 ¹⁴N 的单链。这说明第一代的杂合 DNA 确实是由一条完整的重链和一条完整的轻链组成的。
这一步是干嘛的?彻底排除弥散复制。
因为如果是弥散复制,那第一代的每条链本身就是重轻混合的。加热解开后,每条单链的密度应该还是居中,不会分成一重一轻。
只有半保留复制,第一代的DNA才是一条完整的重链加一条完整的轻链。加热解开后,才会分成纯重和纯轻两条带。
你看,从起点清零,到演绎预测,到实验验证,到对照兜底,到加热排除。整个逻辑链条严丝合缝,没有一个漏洞。
现在回头看,五个设计全清晰了。
发明密度梯度离心,选大肠杆菌弃噬菌体,用¹⁵N弃5-溴尿嘧啶,这三个藏在第一层美里。它们证明了什么叫用最笨的办法解决最难的问题,没有发明新理论,就是把现成的东西试了又试,最后用对了地方。
养15代清零,设对照当尺子,这两个藏在第二层美里。它们证明了什么叫严密到窒息的逻辑,起点必须干净,判断必须有标尺。
当然,五个设计不是完全割裂的。选¹⁵N的时候,他们已经想到了要精确到一条链,这本身就是逻辑。设对照的时候,他们用的还是自己发明的密度梯度离心,这本身就是方法。两层美是拧在一起的。
但不管怎么分,有一点是确定的:这个实验没有任何一个多余的动作,也没有任何一个缺失的环节。每一步都有它不可替代的理由。而且每一步,都不是一开始就想到的,都是走了弯路、试了错、才找到的。
一个24岁年轻人的故事,
会激励另一个年轻人
我每次讲这个实验,都跟学生说一句话。你们以后可能会忘掉半保留的具体过程,忘掉¹⁵N和¹⁴N的区别,甚至忘掉这两个人的名字。
但我希望你们记住这种感觉。面对一个问题,产生一个模糊的想法,然后为了实现它去发明技术、去试错、去换材料、去换标签,最后把所有可能性一个个排除,只剩一个答案。
那是科学最迷人的地方。也是你们每个人都能学会的思考方式。
说个真事。我有个学生叫小邵,我教过他生物,也是他的班主任。后来他考上东北大学,拿了全国大学生数学建模竞赛的国赛一等奖。他给我写过一封信,里面有一句话。
他说:”老师,当年你讲梅塞尔森的时候,我就感觉很激动。因为梅塞尔森当时才24岁,那么年轻,就有那么大的成就。他的事迹对我鼓励和鼓舞很大。”
你看,这就是这个实验的另一层意义。它不只是一个高考考点,不只是一个科学结论。它是一个24岁的年轻人,用四年时间,走了一条充满弯路的路,最后解决了一个根本问题。
而这个故事,会激励另一个年轻人,去走他自己的路。
1954年那两个在金汤力树下聊天的年轻人走通了。今天,你们也走完了。


近期评论